Jediná komunita Mitochodnriakov v ČR a SK
Matrix #14 Prečo príroda vytvorila cholesterol, alias Cholesterol ako frakcionátor deutéria

Čo ak cholesterol nevznikol preto, aby mal človek o viac než dve miliardy rokov neskôr čo merať v krvnom teste? Čo ak príroda riešila oveľa starší problém, ktorý tu bol dávno pred prvou cievou, prvým srdcom aj prvým hormónom?
Cholesterol nie je iba prekurzor steroidných hormónov ani molekula, ktorú máš merať v krvi. Sterolová chémia je jeden z evolučných nástrojov, ktorými život organizuje vodu, vodík a neutrína, pričom jednotlivé izotopy vodíka nespracúva rovnako. A práve preto sa na cholesterol môžeme pozrieť ako na súčasť biologickej frakcionácie deutéria.
Dnes teda nebudeme začínať pri LDL. Začneme tam, kde podľa mňa treba začínať vždy, keď chceš pochopiť život od prvých princípov: pri vode, náboji, elektrónoch, protónoch a ČASE.
Sumár článku
- Prečo pri cholesterole nechcem začať krvným testom, ale vodíkom, elektrónmi a otázkou, odkiaľ život berie energiu?
- Čo sa stalo približne pred 2,3 miliardami rokov a prečo je vznik sterolovej chémie previazaný s kyslíkom?
- Prečo cholesterol nie je iba „tuk“, ale fyzikálna súčasť membránového rozhrania, ktorá mení aj správanie vody?
- Ako sa protónový náboj pohybuje po vode pri membráne a prečo sa celý dej dramaticky zmení v D₂O?
- Prečo 1H a 2H vyzerajú chemicky podobne, no z pohľadu hmotnosti, vibrácie, tunelovania a spinu nie sú vôbec rovnaké?
- Čo majú cristae, kardiolipín, MICOS, OPA1 a ATP syntáza spoločné s riadením protónového toku?
- Prečo má vnútorná mitochondriálna membrána relatívne málo cholesterolu, hoci ho steroidogénna mitochondria cielene potrebuje?
- Ako sa cholesterol dostane k CYP11A1 a prečo sa práve v mitochondrii začína príbeh pregnenolónu a steroidných hormónov?
- C₂₇ vojde, C₂₁ vyjde. Kam ide uhlík, odkiaľ prídu elektróny a prečo sa pri biológii oplatí vždy sledovať elektróny a protóny?
- Čo nám prezrádza deutérium zabudované do novo vytvoreného cholesterolu a čo ukazujú prirodzené D/H podpisy sterolov?
- Prečo cholesterol ako „frakcionátor deutéria“ neznamená sitko, ale celú fyzikálno-chemickú architektúru?
- Pre geekov: prečo má deutéron iba približne 30,7 % magnetického momentu protónu a čo to mení na spinovej informačnej vrstve?
- Prečo má aj syntéza cholesterolu vlastný denný rytmus a čo nám o ňom prezradila práve deutériovaná voda?
- Záverečné zamyslenie: čo ak sme pri cholesterole desiatky rokov začínali úplne zlou otázkou?
P.S. Tento článok nadväzuje najmä na Matrix #12, Matrix #13 a moje staršie články zo série Hormóny. Ak ti dnes niektoré slová ako spin, OMH, pregnenolón alebo Grotthuss nič nehovoria, nevadí (máś slovník pojmov) a tiež ti tieto slová Zložím postupne. Ak ti hovoria až priveľa, o to viac si článok užiješ. 🙂
Ak ti článok dá nový filter na cholesterol, vodík a mitochondrie, zdieľaj ho ďalej. Tiež ma môžeš podporiť kúpou mojich kníh alebo akéhokoľvek produktu na mojom eshope.
P.P.S. Ak chceš byť informovaný vždy medzi prvými o zverejnení nového článku alebo podcastu, prihlás sa na odber nižšie.
Pred prvou cievou tu už bol vodík
Na konci Matrix #13 som ti sľúbil návrat k prótiu, deutériu, jadru protónu a spinu. Dnes ten sľub plním, iba k nemu pridám molekulu, ktorú väčšina ľudí pozná z úplne iného sveta. Cholesterol. A aby si pochopil, prečo ich vôbec dávam do jednej vety, potrebuješ na chvíľu zabudnúť na cholesterol v krvi. A ak patríš k tým pár ľuďom, ktorí tento článok čítajú a zároveň si lekár/PhDr, či iný odborník, ideálne bude, ak nachvíľu „zabudneš“ aj na to, čo o cholesterole vieš.
To, že príroda miluje fraktálnosť, by si už mal vedieť. A ak si videl Septembrový webonár od BIG BANGU DO MATRIXUv, vieš ešte lepšie o čom hovorím. Príroda si nevymýšľa „len tak z nudi“, čo kde a ako môže spraviť, aký životný druh môźe vytvoriť, akému sťaží podmienku, alebo ako ruhu homo sapienss sťažiť život a upchať mu cievy. NIE. Príroda pracuje na princípoch kvantovej mechaniky, na úrovni svetla a s pravdepodobnosťami.
Jediný dôvod prečo tomu stále veľa ľudí nechce veriť je ten, že sme „skazení“ našimi 5 zmyslami, a vnímame ČAS. Príroda nie, respektíve nie vždy. Keď sa totiž svetlošíri rýchlosťou svetla, niečo ako čas nepozná a v tomto prípade preň nehrá úlohu či vyskúša jednu „štrbinu“, alebo miliardnu „slitov“štrbín“. To až pre nás ľudí sa to zdá nemožné!
Zapamätaj si preto: keď chceš pochopiť vrstvu, ktorá vznikla neskôr, pozri sa, aké fyzikálne pravidlá zdedila z vrstiev pod ňou. No a v tomto prípade je fyzika nadradená biológii, pričom matematika je len jazyk, pomocou ktorého ju vieme trochu opísať. No a samotná chémia? Tá je ako veta.
Skúsme si preto položiť dôležitú otázku o cholesterole. Prečo ho život vôbec vytvoril? Prvá cieva ešte neexistovala. LDL receptor tiež ešte neexistoval. Lekár, ktorý ti o miliardy rokov neskôr vytlačí lipidogram, alebo predpíše statíny, už vôbec nie. Napriek tomu sa staré sterolové biosyntetické línie rozdelili približne pred 2,31 miliardami rokov, práve v čase, keď sa dostupnosť molekulárneho kyslíka na Zemi dramaticky menila. [1]
Toto je prvý „filter“, ktorý chcem, aby si si dnes nechal v hlave. Cholesterol nie je odpoveď na moderný problém. Je neskoršia verzia veľmi starej chemickej stratégie. A stará stratégia života sa nikdy nezačína pri diagnóze. Začína pri fyzike prostredia, v ktorom musí systém fungovať.
Ak chceš pochopiť, prečo príroda používa cholesterol, najskôr sa nepýtaj, čo robí s tvojím LDL. Pýtaj sa, aký fyzikálno-informačný problém riešil život v momente, keď steroly vôbec dostali priestor vzniknúť.
Kyslík zmenil Zem. Steroly dostali nový chemický priestor
Približne pred 2,45 až 2,32 miliardami rokov prešla Zem obdobím, ktoré poznáš zo školy ako Great Oxidation Event (veľkú oxidačnú udalosť). Čítať si o tom mohol uź pár rokov dozadu v článkoch o Endosymbióze. Atmosféra ani oceány sa síce nezmenili zo dňa na deň, no menil sa jeden zásadný parameter prostredia: dostupnosť molekulárneho kyslíka. A keď zmeníš silno magneticky-senzitívnu molekulu, zmeníš fyzikálno-chemické prostredie, a evolúcia zrazu dostane k dispozícii reakcie, ktoré predtým neboli energeticky alebo chemicky dostupné alebo le neboli efektívne.
Práve tu sú steroly nádherný príklad. Aj nové š’tudie, ktoré skúmali molekulárne hodiny a maximum pravdepodobnosti pre rozdelenie bakteriálnych a eukaryotických línií sterolovej biosyntézy to odhadli pomerne presne, na 2,31 miliardy rokov, teda prakticky do rovnakého geologického okna, v ktorom sa molekulárny kyslík začal vo väčšom rozsahu stávať súčasťou oceánov a atmosféry. [1]
A tu príde prvé dnešné WAU. Cholesterol nie je iba molekula, ktorá kyslík neskôr ovplyvní cez metabolizmus. Už samotná jeho výroba je kyslíkovo náročná. Moderná cicavčia dráha od acetyl-CoA cez mevalonát, izoprenoidy, skvalén a lanosterol až po cholesterol obsahuje viacero kyslíkovo závislých reakcií. Len, aby si mal predstavu, na vytvorenie jednej molekuly cholesterolu je v kanonickej dráhe potrebných približne 11 molekúl O₂. Mimochodom, nepripomína ti to niečo? Čo tak staršie články o hormónoch a konkrétne o pregnenelóne a aj kortizole? No kyslík nie je jediná „mena“. Tieto kroky zároveň spotrebúvajú redukčné ekvivalenty NADPH. [2]

…A teraz si všimni, čo sa nám už po týchto pár odsekoch deje. Cholesterol sme ešte ani nedostali do mitochondrie a už sme pri kyslíku, elektrónoch a redoxe. Presne preto ma nikdy nebavilo pozerať sa na biológiu ako na zoznam izolovaných molekúl. Molekula má zmysel až vtedy, keď vieš, akú „cenu“ musí systém zaplatiť za jej vytvorenie, v akom prostredí ju dokáže vytvoriť a čo ňou následne zmení. Toto všetko totiž niečo reálne stojí a „systém“ (organizmus) za to zaplatí landauerovu daň.
Dokonca aj dnešná bunka na nedostatok kyslíka reaguje tým, že cholesterolovú syntézu prerába. SREBP2, hlavný transkripčný regulátor sterolovej biosyntézy, je citlivý na kyslíkové a redoxné podmienky. Pri hypoxii sa bunka môže posúvať od vlastnej výroby k väčšej závislosti na exogénnom cholesterole. [2] Čiže aj po miliardách rokov zostáva starý vzťah O₂ ↔ REDOX ↔ STEROL zapísaný v modernej bunke.
Keď príroda získala viac kyslíka, nezískala iba lepší „výfuk“ pre elektróny. Získala nový chemický jazyk. A jedným z jeho najzaujímavejších slov sa stali steroly.
Niektorí z vás sa teraz asi pýtate, že kde je pointa, pretože vek molekuly sám o sebe nič nevysvetlí. To je síce na jednej strane pravda, no na strane druhej to začne byť zaujímavé až v momente, keď cholesterol vložíš tam, kde biologicky patrí najčastejšie: medzi lipidy a vodu. Presne tam, kde sa nachádza veľa protónov, ktoré sú tvorené z kvarkov a gluónov!

Cholesterol nie je tuk plávajúci krvou. Je fyzikálna súčasť rozhrania
Keď niekomu povieš cholesterol, väčšina si predstaví žltú mastnú hmotu, ktorá sa niekde „lepí“ na cievu. Lenže samotná molekula cholesterolu je omnoho zaujímavejšia. Má rigidný systém štyroch spojených kruhov, malú polárnu hydroxylovú skupinu a hydrofóbny zvyšok,… a v membráne sa preto neukladá náhodne. OH skupina zostáva pri polárnych hlavách lipidov a vode, zatiaľ čo jeho rigidná časť sa zasúva medzi mastné reťazce.

Inými slovami, cholesterol stojí presne na hranici dvoch svetov. Na jednej strane voda, náboj a polárne skupiny a na druhej hydrofóbne vnútro membrány. A keď vložíš molekulu presne na takéto rozhranie, nemôžeš od nej očakávať, že iba pasívne „vyplní dieru“. Naopak. Zmení usporiadanie susedných lipidov, ich pohyb, elektrické podmienky membrány a dokonca aj vodu, ktorá sa jej dotýka.
Dnes máme do konca k dispozícií aj štúdie, kde sa sledovala práve orientácia interfacialnej vody pri modelových membránach, kde sa zistilo, že cholesterol menil usporiadanie lipidov aj orientáciu vody pri ich povrchu a výsledok závisel od toho, či bol okolo neho DPPC, DOPC alebo sfingomyelín. [3] Už toto samo o sebe je dôležité, pretože ti to ukazuje základnú fyziku: zmeníš sterol a zmeníš vodné rozhranie. No a keď zmeníš vodné rozhranie – zmeníš MOŽNOSTI (pravdepodobnosť) čoho sú protóny a elektróny vo vode sschopné (tunelovanie, vodivosť, zmena väzieb, grothussov mechanizmus,…)
Ešte zaujímavejšia je ďalšia práca, kde sledovali lokálnu dynamiku vody vo phospholipidových membránach. Po pridaní cholesterolu sa voda pri povrchu membrány mohla pohybovať rýchlejšie, zatiaľ čo voda hlbšie vo vnútri lipidovej vrstvy sa spomalila. Inými slovami niekde bola voda viac „vodivá“ a inde bola viac „rezistentná“. [4] Čiže veta „cholesterol robí membránu tuhšou“ je podobná, ako keby si o meste povedal, že je „rýchle“. Kde? Na diaľnici? Na chodníku? V zápche? O druhej ráno?
Presne toto som sa ti snažil posledné roky ukázať aj v Chiralite #21. Voda pri povrchu biologickej štruktúry nie je rovnaká ako pohár vody na stole. Je orientovaná poľom, nábojom, povrchom, geometriou a vodíkovými väzbami. A ak zmeníš túto vrstvu, zmeníš aj to, ako sa v nej môže pohybovať náboj.
Cholesterol navyše mení aj dipólový potenciál lipidového rozhrania. [5] Dôvod je ten, že membrána v tvojich bunkách je elektricky aktívne, hydratované rozhranie. A cholesterol je jedna z molekúl, ktoré určujú jeho lokálnu fyziku. Inými slovami – cholesterol robí s membránami niečo podobné ako spravilo DHA, keĎ sa pred 560 miliónmi rokmi objavila v oceáne – umožňuje životu využívať fyziku inak!
Ak cholesterol zmení lipidy, zmení vodu. A ak zmení vodu, zmení podmienky pre náboj. A keď zmeníš podmienky pre náboj, už nie si iba pri „tuku“. Si pri biofyzike.

Voda pri membráne nie je kulisa, ale „cesta“ pre náboj
Teraz príde ďalší detail, bez ktorého podľa mňa cholesterol nikdy nepochopíš dostatočne hlboko. Protón vo vode necestuje tak, ako si možno predstavuješ. Nie je to jedna malá gulička H⁺, ktorá sa odlepí na jednom konci membrány, prepláva celou vzdialenosťou a na druhom konci zaklope na ATP syntázu.
Vo vodnej sieti sa protónový náboj môže šíriť tým, že sa neustále reorganizujú vodíkové väzby. Jeden kyslík prijme protónový charakter, susedná väzba sa prestaví, ďalšia sa otočí a náboj sa posunie ďalej bez toho, aby jedna konkrétna molekula vody musela precestovať celú trasu (poznáš to ako Grotthussov mechanizmus). Protóny dokonca vykazujú úžasné vlastnosti, čo sa vodivosti týka a volá sa to „protonicita“, pričom v niektorých podmienkach sa vedia z bodu A do bodu B presunúť rýchlejšie ako iné častice.

A presne pri membráne je táto fyzika ešte zaujímavejšia, pretože tam sa geometria obracia v prospech mitochondrie. Pre tých, čo tomuto nerozumejú, alebo nehápu, mám dve štúdie. Prvú, kde uvoľnili protóny pri povrchu modelových membrán pomocou UV pulzu a sledovali, ako rýchlo sa ich náboj dostane k vzdialenému senzoru. Zistili, že rýchly laterálny prenos prebieha po interfacialnej vode a nepotrebuje dokonca ani reťaz ionizovateľných lipidových skupín ako sériu pevných odrazových mostíkov. [6] Zaujímavé, čo poviešM
A teraz to najlepšie. V druhej výskumníci vymenili H₂O za D₂O (obohatili o detuérium), a celý prenos protónového náboja sa výrazne spomalil. [6] Rovnaký povrch, rovnaká experimentálna geometria, a rovnaký elektrický náboj jadra vodíka. No iný izotop a zrazu iné „tempo.„
No a práve tu a teraz by ti názov článku Matrix #14 mal naznačiť prečo sa volá „matrix“. Pretože ťa do „matrixu“ privádza… matrixu mitochondrie, ale aj do toho „obrazného matrixu“. Cholesterol mení membránové rozhranie a vodu pri ňom, no a izotopové zloženie mení rýchlosť procesu. Presne toto je totiž dôvod prećo matka príroda syntetizovala cholesterol eťe Ďaleko, ďaleko predtým, ako bol komplexný život a nejaké cievy. Potrebovala ho na izotopickú frakcionáciu, čím bola schopná preniesť viac informácie skrz systém a zabrániť tak väčšiemu úniku entropie do okolia.
Takže otázka už neznie iba: koľko cholesterolu? Otázka znie: aké rozhranie cholesterol vytvára a akému vodíku tým vytvára podmienky?
Živá bunka nikdy nereaguje na jednu molekulu izolovanú vo vákuu. Reaguje na molekulu v poli, vo vode, pri určitej teplote, geometrii, redoxe a v čase.
Voda pri membráne nie je mokré pozadie biológie. Je súčasťou vodiča. A ak zmeníš izotop vodíka, zmeníš aj vlastnosti tohto vodiča.
Len tak mimochodom, pár dní dozadu vyšlo niekoľko nových štúdií, ktoré okrem iného vyvracajú klasické chápanie biológie a zasa raz ukazujú, źe kvantová biológia „prebíja“ všetko ostatné. Dôvod prečo je jednoduchý – kvantovo mechanické „veci“ sú možné aj v teplom a vlhkom prostredí, akými sú aj naše bunky. Ba čo viac – už aj štúdie potvrdzujú, že naše mitochondrie sú nie len malé „elektrárne“. Sů omnoho viac a okrem iného svoju membránu, jej geometriu a aj ZVUK synchronizujú a „ladia“ s magnetickým poľom Zeme, ale aj okolia (kolónií mitochondrii v iných tkanivách).
Rovnaký vodík neznamená rovnakú fyziku
Prótium 1H a deutérium 2H patria chemicky tomu istému prvku, pričom obe jadrá nesú jeden kladný elementárny náboj. Preto ich periodická tabuľka dá do jedného políčka. Lenže živá reakcia nečíta periodickú tabuľku, ale vníma jej hmotnosť na základe čoho sa mení jej HMOTA a GEOMETRIA (topológia priestoru), väzbu, vzdialenosť, vibráciu, elektrické pole a pravdepodobnosť prechodu.
Prótium má v jadre jeden protón. Deutérium má protón a neutrón. Výsledok je jednoduchý: deutériové jadro je približne dvojnásobne ťažšie. A keď vymeníš ľahké jadro v chemickej väzbe za takmer dvojnásobne ťažké, zmeníš vibračnú frekvenciu väzby, jej nulovú energiu aj kinetiku reakcií, v ktorých sa táto väzba tvorí alebo láme. Odtiaľ poznáš kinetický izotopový efekt.

Ak si čítal Matrix #12, presne vieš, prečo ma toto baví. Ukázal som ti tam, že v kvantovej chémii niekedy rozhoduje jediný angström. Pravdepodobnosť tunelovania totiž vníma výšku a šírku bariéry, hmotnosť častice, energetické stavy a geometriu donor-akceptorového páru (teda priestoru). Čím ťažšie jadro chceš pretlačiť rovnakou bariérou, tým väčší rozdiel môže vzniknúť v rýchlosti procesu a tým väčšia rezistencia.
A tu sa vraciame k starej Chiralite #4, kde som ti ukázal prečo ¹H = bit a ²H = šum. Vtedy som chcel, aby si pochopil najmä to, že dva izotopy rovnakého prvku nemusia niesť rovnakú informačnú kvalitu v citlivom biologickom obvode.
Prvá vrstva je hmotnosť a kinetika. Druhá je voda a vodíkové väzby. Tretia je geometria a tunelovanie. A ešte sme sa ani poriadne nedostali k štvrtej vrstve, ktorou je spin a magnetický moment jadra (teda informačná stránka). K tomu sa však vrátim neskôr, pretože práve tam sa Matrix #14 stretne s OMH, Fibonacciho „jemnosťou akcie“ a spinovou chémiou.
Rovnaký náboj neznamená rovnakú informáciu. A rovnaký chemický názov neznamená rovnakú pravdepodobnosť reakcie.

Nanogeometria Crysty je postavená okolo protónu
Teraz sa presuňme z všeobecnej membrány do tej, ktorá ma zaujíma najviac. Do vnútornej mitochondriálnej membrány. Ak si pamätáš niektorý z mojich obrázkov, mitochondria vyzerala ako fazuľa s pár pokrčenými čiarami vo vnútri. samozrejme v každej Časti tela mitochondrie vyzerajú odlišne (viac guľaté, predĺžené,…), ale vo všeobecnosti si ich kľudne predsatuj takto.
Ak by si sa teraz spýtal nejakého profesora alebo odborníka na mitochondriu dnes prečo má mitochondria CRYSTU, pravdepodobne by ti povedal vysvetlenie a to, že zväčšujú jej plochu. Plochu membrány mitochondrie.

To je síce pravda, no je to podobné ako povedať, koncertná sála má svoj tvar preto, aby sa do nej zmestilo viac stoličiek. Plocha je iba začiatok. Crista určuje krivku membrány, vzdialenosti, lokálne elektrické pole, usporiadanie proteínov a protónové mikroprostredie. MICOS organizuje crista junctions, OPA1 pomáha udržiavať ich dynamiku a diméry ATP syntázy samy vytvárajú zakrivenie na okrajoch krist. Moderný pohľad na IMM (inner membrane = vnútorno membránové prepojenie) však otvára nové uhľy pohladu [7].
Nová štúdia, ktorú som ti spomenul vyššie, dokonca potvrdila existenciu kvantových stavov v mitochondriách. Popísali tam jav, označený ako mito-polariton, ktorý funguje na základe ..a teraz si radšej sadni…. na základe rezonancie infračerveného svetla a vibrujúcich lipidových väzieb. Vďaka tomuto prepojeniu dokážu mitochondrie v tvojom tele, hoci si to neuvedomuješ, prenášať energiu a informácie okamžite, bez strát a na diaľku (presne ako dokonalý optický kábel).
A medzi lipidmi tejto membrány hrá špeciálnu úlohu kardiolipín. Má štyri acylové reťazce, dve fosfátové skupiny a nezvyčajnú geometriu, vďaka ktorej sa krásne hodí do zakriveného, elektricky aktívneho prostredia IMM. Podporuje interakcie respiračných komplexov, superkomplexov aj ATP syntázy a je úzko previazaný s architektúrou cristae. [8]

Čo je však pre dnešný článok ešte zaujímavejšie, kardiolipín nie je iba stavebný lipid. Jeho záporné rozhranie mení, koľko protónov sa pri membráne zdržiava a ako sa tam správajú. Zapamätaj si, že vyšší obsah kardiolipínu zvyšuje množstvo protónov asociovaných s membránou a mení ich transmembránový tok. Efekt sa však následne mení aj s krivosťou membrány. [9]
Teraz sa na chvíľu zastav. Krivosť membrány zmení protónový tok… Potom si spomeň na prácu Einsteina a slová Wheelera: „Časopriestor hovorí hmote, ako sa má pohybovať a hmota hovorí časopriestoru, ako sa má ohýbať„. Nepripomína ti to teraz niečo? Žeby práve to, čo práve vidíš Čierne na bielom – živé bunky? Presne toto je Matrix. Nie „komplex I urobí A, komplex III urobí B“. Život si najprv vytvorí geometriu a tá následne zmení pravdepodobnosti pohybu náboja. Tvar nie je dekorácia, ale súčasť mechanizmu.
Dokonca aj lokálne pH pri jednotlivých mitochondriálnych komplexoch nemusí byť rovnaké a a nie je, rovnako ako jej elektrický náboj a teplota.

Presne preto mitochondrie zhromažďujú protóny rovnako ako hviezdy na oblohe. V oboch prípadoch, aj na základe jeho, dokážu pôsobiť ako tzv. plazma a dokonca až oblúková plazma. No a jednou z významov tejto plazmy pri vysokej teplote/tlaku (alebo na malom rozmere) je to, źe generujú vysokoenergetické fotóny aj neutrína. Že by preto uź aj veda prichádzala na to, že neutrína nám môžu o priestore toho prezradiť viac, ako by sa zdalo?
A teraz si sem ešte pridajme deutérium. Nie ako cudziu toxickú molekulu, ale ako ťažšiu verziu toho istého jadra, od ktorého je mechanizmus závislý. Ak je pohyb náboja závislý od vodíkovej siete, lokálnej vzdialenosti, krivosti, pH a elektrického poľa, potom izotopová hmotnosť prestáva byť maličký detail. Stáva sa ďalším parametrom geometrie toku.
Crista totiž nie je nádoba s protónmi. Je to „plošák“, ktorý vytvára podmienky, aby sa správny náboj dostal v správnom čase na správne miesto, s čo možno najmänšou termodynamickou stratou. No a sem patrí nie len biofotón, ale aj neutrína.
Ďalší paradox pre odborníkov: Crista má cholesterolu málo. Prečo?
Ak cholesterol tak zásadne mení membránu a vodu pri nej, človek by čakal, že energetická membrána mitochondrie ho bude plná. Lenže presne tu ti príroda ukáže, prečo nemá rada naše jednoduché príbehy. Mitochondrie majú v porovnaní s plazmatickou membránou relatívne málo cholesterolu a obzvlášť vnútorná mitochondriálna membrána drží jeho obsah veľmi nízko a veľmi kontrolovane. [11] Len tak mimochodom, podobne je to aj s DHA – vnútorná membrána nemá prakticky žiadne, zatiaľ čo vonkajšia membrána, a aj endoplazmaticke retikulum, ktoré je okolo kolónie mitochondrii, má DHA veľmi veľa. Žeby náhoda?
Prečo by teda život vytvoril molekulu, ktorá vie upravovať membránové rozhranie, a potom ju z miesta najcitlivejšieho protónového toku odstránil? Môže to byť aj preto, pretože každá časť mitochondrie (matrix, medzi membránový pristor vs vonkajšia membrána) tvorí odlišnú formu plazmy?
Plazmatická membrána rieši mechanickú stabilitu, priepustnosť, receptory, lipidové domény, kontakt s okolím a obrovské zmeny podmienok. Zároveň musí udržiavať rýchlejšiu synchronizáciu času, na rozdiel od CRYSTY. Crysta je evolučne staršia a čas na nej musí plynúť odlišne. Crista zasa potrebuje extrémne vysokú hustotu proteínov, ostré zakrivenie, rýchlu redoxnú chémiu a presnú prácu s protónmi. Preto v nej dostáva väčší priestor kardiolipín, fosfolipid, ktorého štyri acylové reťazce a záporné rozhranie podporujú presne ten typ protein-lipidovej nanogeometrie, ktorú mitochondria potrebuje. [8]
Aj na základe tohoto by si mal pochopiž, že cholesterol a kardiolipín sú ako dva fyzikálne nástroje. Cholesterol dokáže výrazne meniť usporiadanie bežných lipidových membrán a ich hydratačné rozhranie, zatiaľ čo Kardiolipín pomáha stavať špecializované mitochondriálne prostredie, kde sa elektrónový tok prekladá do protónového gradientu a ten do rotácie ATP syntázy, na ktorej sa podiela presun protónov (a možno aj viac).
A teraz prichádza detail, ktorý je podľa mňa nádherný a nesmierne dôležitý. Hoci crista nechce mať vysoký štruktúrny obsah cholesterolu, steroidogénna mitochondria ho vie cieľene a akútne priviesť presne k vnútornej membráne, keď ho potrebuje ako substrát. [11] Málo materiálu v stene teda neznamená malý význam toku cez dané miesto.
Crista nechce byť postavená z cholesterolu. Ale keď potrebuje z cholesterolu vytvoriť nový biologický signál, vie si ho pritiahnuť presne tam, kde má premena začať. A spraví to čisto elektro-magneticky.
Keď ho crista nechce veľa, prečo ho mitochondria cielene ťahá dnu?
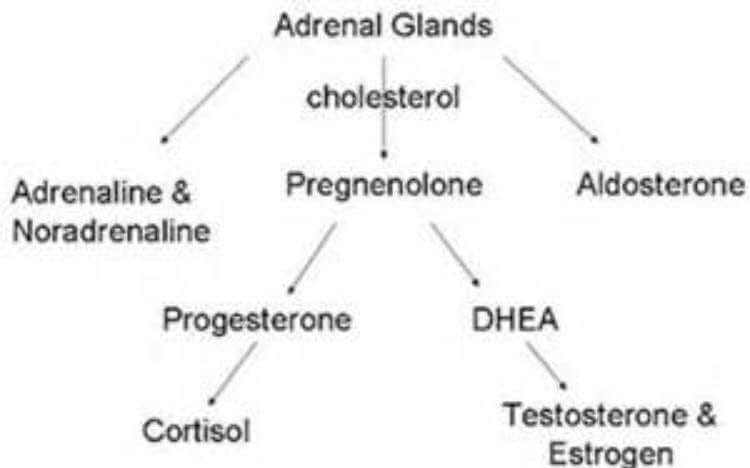
Ak si môj blog čítal pred pár rokmi, práve teraz sa ti začne skladať starý príbeh s novým. V Hormóny #5 som ti ukázal, že prvý zásadný krok tvorby steroidných hormónov nezačína niekde abstraktne v „endokrinnom systéme“. Začína v mitochondrii, keď sa cholesterol dostane k enzýmu, ktorý z neho vytvorí pregnenolón.
Dnes pochopíš fyziku tej dráhy. Cholesterol musí najskôr prísť k vonkajšej mitochondriálnej membráne a v steroidogénnych bunkách sa jeho akútny presun k vnútornej membráne spája najmä s proteínom StAR (steroidogenic acute regulatory protein). Práve dostupnosť cholesterolu na vnútornej membráne je jedným z hlavných regulačných bodov steroidogenézy. [12]
A na vnútornej membráne zasa „čaká“ CYP11A1, starším názvom P450scc (cholesterol side-chain cleavage enzyme). Jeho katalytická časť je orientovaná smerom k matrixu a práve tam sa začne trojkroková premena cholesterolu na pregnenolón. [13]
Všimni si tú topológiu. Cholesterol sa syntetizuje najmä v ER a cytosolovo orientovaných dráhach. Potom sa transportuje cez bunku, dostane sa k mitochondrii, prejde k IMM a až tam ho enzým na matrixovej strane rozoberie na nový steroidný skelet. Život teda nevyrába cholesterol preto, aby ho náhodne rozhádzal po bunke. Posiela ho cez konkrétne rozhrania na konkrétne miesto, rovnako ako by šiel „evolučne späť“ (od eukaryotov = mitochondria pôvodom archeón, až po prokaryoty a jednoduchý život = vnútorná membrána pôvodom prokaryot).
Presne preto som ti už v Hormóny #6 a Hormóny #7 ukázal, že steroidogenéza nie je iba „hormónová dráha“, ale odraz energetického, redoxného a cirkadiánneho stavu bunky. Dnes k tomu pridávame ďalšiu vrstvu: vodíkovú a izotopovú.
A teraz sa na chvíľu zamysli. Vnútorná membrána drží cholesterol nízko, pretože potrebuje inú lipidovú architektúru. Napriek tomu má špecializovaný systém, ktorý cholesterol prinesie presne k enzýmu v momente, keď ho chce premeniť. Toto nie je rozpor, ale riadený tok. A riadený tok je v živom systéme často dôležitejší ako statická koncentrácia.
C₂₇ vojde a C₂₁ vyjde = ak chceš nájsť „vinníka“, sleduj elektróny a protóny
V mojich starších článkoch o ekonomike (ale aj inde) som veľakrát používal jednoduché pravidlo: keď chceš nájsť páchateľa, sleduj tok peňazí. Ak ma pamäť neklame, prirovnal som ti to aj ku rozprávke Karkolka, kde zasa hovorili, źe „vždy sleduj králika“. 😀 Politici môžu hovoriť o ľuďoch, hodnotách a lepšej budúcnosti, no keď chceš zistiť, čo sa naozaj deje, často stačí pozrieť, kam tečú peniaze. No a v biológii máme podobné pravidlo. Keď sa v nej začneš strácať v názvoch enzýmov, hormónov a receptorov, sleduj fotóny, elektróny a protóny (teda biofyziku).
Tak poďme sledovať tok. Cholesterol má vzorec C₂₇H₄₆O. Pregnenolón, prvý steroidný prekurzor, ktorý z neho mitochondria vytvorí, má C₂₁H₃₂O₂. Medzi nimi však nie je magické odčítanie šiestich uhlíkov a štrnástich vodíkov. CYP11A1 vykoná tri po sebe idúce oxidačné kroky. Najskôr 22R-hydroxyláciu, potom 20R-hydroxyláciu a napokon rozštiepi väzbu medzi C20 a C22. Výsledkom je pregnenolón a šesťuhlíkový aldehyd, 4-metylpentanal. [13]
A teraz sleduj elektróny. CYP11A1 si ich nevytiahne zo vzduchu. Elektróny prichádzajú z NADPH (teraz by ťa mal napadnúť pentózový cyklus), cez ferredoxínreduktázu FDXR a ferredoxín FDX1 až k hemovému centru CYP11A1. Celý trojkrokový proces je šesťelektrónová oxidácia a pri ideálne spojenej reakcii spotrebuje tri molekuly O₂ a tri NADPH. [13]
Malá poznámka pre šikovnejších – NADPH má obsahovať „H“ a nie „D“ a zároveň mitochondria musí generovať vysoké magnetické pole (MP). Ak je MP nízke a/alebo je tam nadbytok „D“ = proces je biofyzikálne „prepnutý“ a začne ísť iným smerom.
A ak si chceš „účtovníctvo“ skontrolovať, zjednodušená čistá bilancia vyzerá takto:
cholesterol + 3 O₂ + 3 NADPH + 3 H⁺ → pregnenolón + 4-metylpentanal + 4 H₂O + 3 NADP⁺
Vidíš, čo je na tom krásne? Cholesterol vstupuje do mitochondriálnej reakcie, ktorá súčasne potrebuje kyslík, elektróny, protóny a vytvára vodu. Presne tie premenné, ktoré v tejto sérii sledujeme od začiatku. Preto som už v Hormóny #5 a neskôr v Hormóny #7 tlačil čitateľa k elektrónom. Dnes iba otvoríme kapotu a pozrieme sa, kadiaľ presne idú.
A tým sa mení aj pohľad na starú vetu, že cholesterol je prekurzor steroidných hormónov. Áno, je, lenže to je názov procesu, nie jeho fyzika. Fyzika hovorí, že do presne umiestneného enzýmu príde C₂₇ sterol, redoxný systém mu dodá šesť elektrónov, kyslík umožní tri oxidácie, bočný reťazec sa rozštiepi a vznikne C₂₁ steroidný skelet. To je tok hmoty, náboja aj vodíka v jednom. A ak to chceš ešte viac po lopate = je to landauerov princíp v praxi.
Presne preto sa pri mitochondrii neoplatí hypnotizovať názvom hormónu. Pregnenolón je produkt. Dôležitá otázka znie, aký redox a typ vodíka musel prebehnúť, aby vôbec vznikol. Lebo ak sleduješ iba produkt, vidíš poslednú stranu detektívky. Ak sleduješ elektróny a protóny, vidíš páchateľa, motív aj cestu na miesto činu. V provm prípade si ako policajt za prepážkou, ktorého nebaví práca a v druhom si ako Sherlock Holmes!
Zapamätaj si teda, ževV politike sleduj peniaze. V mitochondrii sleduj elektróny a protóny. Obe ti často povedia viac než oficiálny príbeh. 🙂

Deutérium zanecháva v steroloch stopu. A to je presne pointa
Teraz ti prezradím niečo, čo som nedávno hovoril pár ľuďom osobne. Daj človeku malé množstvo deutériovanej vody a sleduj, kam sa deutérium dostane. Práve tak sa totiž už desaťročia meria rýchlosť syntézy cholesterolu.
Už v roku 1990 podávali ľuďom D₂O, meral obohatenie telesnej vody deutériom a následne sledovali jeho zabudovanie do plazmatického cholesterolu. Takto dokázali merať novú syntézu cholesterolu v krátkych časových úsekoch. [14] Toto je pre mňa nádherný dôkaz jedného jednoduchého faktu: vodík telesnej vody a vodík novo vytvoreného cholesterolu nie sú dva oddelené svety. Metabolizmus ich prepája.
A nejde iba o umelé značenie D₂O. Izotopový podpis sterolov sa dá merať aj pri prirodzenom zastúpení deutéria. Pri rastlinách sa už dávnejšie ukázalo, že jednotlivé lipidy a steroly môžu byť voči zdrojovej vode výrazne izotopovo frakcionované, pričom ich δD nesie podpis biosyntetickej dráhy. [15] Neskôr sa podobné merania robili aj pri morských riasach a mäkkýšoch, kde jednotlivé steroly opäť nevychádzali s identickým vodíkovým podpisom. [16] Žeby náhody?
A áno, máme aj ľudský cholesterol. V práci z roku 2018 vedci analyzovali cholesterol zo žlčových kameňov dvoch pacientov a pri prirodzenom izotopovom meraní našli δD približne od −218 do −254 ‰ voči štandardu (čo je cca 150 PPM). [17] Mimochodom, všímaj si samotný princíp: ľudský cholesterol nesie merateľný vodíkový izotopový podpis. Žeby náhoda?
Presne tu sa podľa mňa začína meniť význam slova frakcionácia. Frakcionácia neznamená, že bunka drží v ruke dve guličky, jednu označenú H a druhú D, ale, že si vedome vyberá. Znamená to teda, že dve izotopové verzie toho istého prvku majú rozdielne fyzikálne vlastnosti, a preto pri opakovaných enzymatických, redoxných, membránových a vodíkových reakciách nemusia prechádzať rovnakými rýchlosťami ani s rovnakou pravdepodobnosťou. Výsledkom je odlišný izotopový pomer medzi zdrojom a produktom.
A teraz si to spoj s tým, čo už vieš. Cholesterolová syntéza spotrebúva kyslík aj NADPH. Cholesterol mení membránové rozhranie a vodu pri ňom. Protónový transport po interfacialnej vode sa spomalí v D₂O. Steroly nesú merateľný D/H podpis. V mitochondrii sa cholesterol cielene presunie k CYP11A1, kde prejde šesťelektrónovou oxidáciou a vzniká voda aj nový steroidný skelet. To nie sú náhodné kapitoly. To sú rôzne pohľady na ten istý vodíkový účtovný systém.
Deutérium nemusíš „vidieť“ voľným okom. Stačí sa pozrieť na izotopový podpis produktu a zistíš, že príroda si počas syntézy vodík triedi podľa fyziky reakcie.
Cholesterol ako frakcionátor deutéria
Až teraz by si mal pochopiť vetu z názvu článku. Cholesterol je súčasť biologického systému frakcionácie deutéria. Ak si však pod tým predstavíš filter na vodu s mikroskopickými dierkami, predstavuješ si to zle. Život izotopy netriedi sitom. Triedi ich energetickými bariérami, väzbami, enzýmami, vodou, membránami, redoxom, geometriou a časom. Toto je totiž elektronický a fotonický proces, podobne ako pracuje plošák v tvojom telefóne, ktorý skrz tranzistory posiela elektróny cez rôzne dráhy, na základe čoho vykonávajú komplexné a zložité výpočtové operácie.
Predstav si výrobnú linku, na ktorej máš dve takmer rovnaké súčiastky. Jedna je ľahšia, druhá ťažšia. Na širokom dopravníku rozdiel možno takmer nevidíš. Potom však príde vibrujúca brána, úzky tunel, otočný mechanizmus a séria presných časovaných krokov. Zrazu sa z malej fyzikálnej odlišnosti stane rozdiel pravdepodobností. Jedna súčiastka prejde rýchlejšie, druhá pomalšie. Jedna väzba sa vytvorí ľahšie, druhá potrebuje inú konfiguráciu. Po tisícoch opakovaní už produkt nemá rovnaký izotopový pomer ako vstup.
Presne toto znamená frakcionácia. A cholesterol sedí v úžasne zaujímavom uzle tejto siete. Jeho biosyntéza potrebuje O₂ a NADPH. [2] Ako membránový sterol mení lipidové usporiadanie, elektrické rozhranie a interfacialnu vodu. [3, 4] Jeho vodíky nesú merateľný izotopový podpis [17] a v steroidogénnej mitochondrii sa cielene dostane k CYP11A1, kde jeho uhlíkový skelet prejde oxidačnou prestavbou závislou od elektrónov, kyslíka a protónov. [13]
To je dôvod, prečo mi veta „cholesterol je iba prekurzor hormónov“ znie podobne ako „rieka je iba voda“. Chemicky to môže byť správne, no fyzikálne ti uniká celý systém. Rieka má koryto, gradient, rýchlosť, turbulenciu, brehy a smer. Cholesterol má membránové rozhranie, redoxnú históriu, izotopový podpis, transport a enzymatický osud.
Rovnaký náboj, iný magnetický podpis
Teraz malé vyvrcholenie… Pretože deutérium sa od prótia nelíši iba hmotnosťou. Líši sa aj tým, ako jeho jadro nesie a sprístupňuje magnetickú informáciu.
Jadro obyčajného 1H je jeden protón so spinom I = 1/2. Deutéron v 2H obsahuje protón a neutrón a celkový jadrový spin má I = 1. [19] A rozdiel nie je malý ani pri magnetickom momente. Pomer magnetického momentu deutéronu k protónu je μd/μp = 0,307012…. Inými slovami, deutéron má približne 30,7 % magnetického momentu protónu. [20] Nie je to zvlášne? Takmer dvojnásobne rozdielna hmotnosť, chemicky totožný prvok = vodík a iba 30,7% MM?
Ak si čítal moju staršiu Chiralitu #14 o Fibonacciho postupnosti a jemnosti akcie, presne tu vidíš, prečo som sa k „jemnosti“ stále vracal. Biologická informácia nemusí byť iba ÁNO/NIE. Môže byť rozdiel v amplitúde, fáze, orientácii, frekvencii, spinu, magnetickom momente alebo pravdepodobnosti prechodu. Dve jadrá môžu niesť rovnaký elektrický náboj a pritom vytvárať úplne inú lokálnu spinovú krajinu, vďaka čomu menia geometriu tvojich buniek radikálne odlišne (rovnako ako môže malá čierna diera ohnúť priestor viac ako veľké a ťažké SLNKO)!
Teraz sa vráť ku článkom Matrix #12 a k OMH, orbitálnemu momentu hybnosti. V živom redoxnom systéme máš flavíny, radikály, Fe-S centrá, hemové skupiny, kyslík a množstvo prechodných stavov, kde sa elektrónový a jadrový spin môžu dostať do hry. Magnetický moment jadra potom nie je ozdobná fyzikálna konštanta, ale určuje, ako jadro vstupuje do hyperjemných interakcií s elektrónovými spinmi.
Pre zaujímavosť – ďalšia š’tudia, teraz konkrétne v marci 2026 v Nature. Výskumníci dokázali magnetickou rezonanciou ovplyvniť dynamiku spinovo korelovaných radikálových párov priamo v živom transgénnom C. elegans. V systéme červeného fluorescenčného proteínu a flavínu menili statické a rádiofrekvenčné magnetické polia reakčnú dynamiku aj fluorescenciu. [23] To je presne typ experimentu, ktorý ukazuje, že spinová informácia v živej hmote nie je iba poetická metafora. Je to podobné ako experimenty, ktore som spomínal vyššie, kde zasa preukázali kvantové javy v mitochondrii. Zistili dokonca, že vnímajú evľmi citlivo magnetické pole zeme aj shumannovu rezonanciu, na základe čoho ovplyvňuju cirkadiánne proteíny v tele aj produkciu ATP (okrem iného).
A teraz sa vráť k protiu a deutériu. Jedno má spin 1/2 a väčší magnetický moment. Druhé spin 1 a magnetický moment približne tretinový. K tomu pridaj rozdiel hmotnosti, vibrácie, kinetického izotopového efektu a vodíkovej siete. Prečo by evolúcia všetku túto fyzikálnu asymetriu ignorovala? Veď evolúcia robí presný opak. Ak existuje opakovateľný rozdiel pravdepodobností, život ho dokáže postupne zabudovať do funkcie.
Práve preto používam pri 1H a 2H jazyk informačnej kvality. Nie preto, že jeden atóm je „dobrý“ a druhý „zlý“. Ale preto, že rovnaký náboj s inou hmotnosťou, spinom a magnetickým momentom nevstupuje do jemného kvantového obvodu rovnakým spôsobom. Jeden môže slúźiť ako mikro tranzistor, zatiaľ čo duhý ako rezistor. A frakcionácia je jeden zo spôsobov, ako môže živý systém túto asymetriu pretaviť do poriadku.
Prótium a deutérium nie sú dve rovnaké písmená napísané iným fontom. Sú to dve fyzikálne odlišné verzie vodíka, ktoré do živého obvodu vnášajú inú hmotnosť, inú vibračnú dynamiku a iný magnetický podpis.
Aj cholesterol má hodiny… a prezradilo nám to práve deutérium
Až ti najbližšie budú merať cholesterol a prípadne ti ponúknu lieky na jeho znižovanie, zamysli sa metaforicky nad týmto: Čo keby policajt hodnotil miesto činu a to, čo páchateľ sravil a hlavne AKO to spravil len na základe fotografie? Dá sa to? Z malej časti hej, no video by bolo lepšie, nemyslíš? Lebo by videl jeho celý pohyb v Čase a nie len jeden úsek bez časovej osi.
No a krvný výsledok bez ČASU je ako fotografia. Biológia však nie je fotografia, ale film (Tok).
No a práve deutériovaná voda nám ukázala, že syntéza cholesterolu má vlastný denný rytmus. V iných š’tudiách dali šiestim zdravým ľuďom D₂O a počas 48 hodín opakovane merali, ako rýchlo sa deutérium z telesnej vody zabudováva do novo syntetizovaného cholesterolu. [24]
Výsledok? Frakčná rýchlosť syntézy voľného cholesterolu bola najnižšia približne medzi 14:00 a 18:00 a vrcholila okolo 06:00 ráno. [24] A teraz príde detail, ktorý si zapamätaj: celková koncentrácia plazmatického cholesterolu počas tých 48 hodín nemusela ukázať výrazný časový rozdiel, hoci rýchlosť jeho syntézy oscilovala.
Toto je podľa mňa dokonalá ukážka problému modernej statickej biológie. Zmeria koncentráciu a povie ti, čo „máš“. Lenže bunka medzičasom mení rýchlosť výroby, transport, esterifikáciu, príjem receptorom, oxidáciu aj hormonálny dopyt. Rovnaké číslo v krvi nemusí znamenať rovnaký tok. Presne ako hladina vody v priehrade nemusí povedať, či cez ňu práve tečie jeden kubík za sekundu alebo sto, ak sa súčasne mení prítok aj odtok.
A teraz si všimni, aké absurdne pekné je, že tento cirkadiánny rytmus cholesterolu sme mohli odhaliť práve vďaka izotopu vodíka. Deutérium tu fungovalo ako stopovacia značka, ktorá nám umožnila vidieť tok, ktorý obyčajná koncentrácia zakrývala. [14, 24]
Presne preto som ti roky dozadu spísal Hormóny #3, Hormóny #4. V krvi nevidíš iba „cholesterol“. Vidíš momentálny výsledok systému, ktorý sa mení v čase. A čas v bunke nie je dátum v kalendári. Je to poradie fyzikálnych udalostí, ktoré riadi svetlo, hormóny, redox, jedlo, teplota a aktivita mitochondrie.
Pred 2,3 miliardami rokov sterolová chémia vstupovala do sveta, ktorý práve získaval nové kyslíkové podmienky, vďaka čomu sa mohol stať viac magneticky senzitívnym a potreboval lepšie frakcionovať vodík na to, aby dokázal prenášať viac INFORMÁCIE (MM) za jednotku času, no a protón je v tom efektívnejší ako deuterón.
Záverečné zamyslenie alias možno sme pri cholesterole začali úplne zlou otázkou
Cholesterol nie je nepriateľ, ktorého telo omylom vyrába. Potrebuješ ho na membrány, steroidné hormóny, vitamín D, žlčové kyseliny a množstvo ďalších vecí. To je však iba prvá vrstva. Dnes sme sa od otázky „na čo cholesterol potrebujem?“ dostali k oveľa zaujímavejšej otázke: akú fyziku cholesterol umožňuje?
Sterolová chémia sa začala rozvíjať v čase, keď sa pred približne 2,3 miliardami rokov menila kyslíková tvár planéty. Výroba dnešného cholesterolu stále stojí kyslík a redukčné ekvivalenty. Cholesterol vložený do membrány mení lipidy, elektrické rozhranie aj vodu. Voda pri membráne zase nie je pasívna, ale prenáša protónový náboj. A keď v nej vymeníš H za D, tempo prenosu sa zmení a možnosť (aj množstvo) prenosu BIT-ov za jednotku času tiež.
Na záver malá lekcia cholesterolu pre všetkých mitochondriakov. CO2 a cholesterol…
VLDL cholesterol je najvyšší ráno a zvýši sa keď vychádza slnko, aby priviedlo tuk a cholesterol po tele do mitochondrie na oxidáciu. VLDL je zároveň najväčší objemom. Toto si dúfam vedel. Mimochodom, ak máš cholesterol mimo leta už pod 4 mmol/l a vysoký tlak, pravdepodobne máš problém. Dôvod je v riadkoch nižšie.
Poďme však ďalej. Vieš ako zistíš, či ti neklamem? Čo tak CO2? CO2 je to, čo našu plazmu, rovnako ako vrchnú časť atmosféry, ochladzuje. Tiež však okysličuje naše tkanivá, pretože má vyššiu afinitu na hemoglobín, vďaka čomu rotujúca ATP-syntáza zdravej mitochondrie pritiahne paramagnetický kyslík do tkaniva.
Takto mitochondria vyprodukuje dostatok vody, CO2 (v krvi teda vzrastie) a tiež ATP. Vďaka tomu bude mitochondria oscilovat správnou frekvenciou spolu s THz infračerveného svetla a spaľovať tuk a ty nebudeš priberať, ak nemusíš. Zasa raz vidíš, že priberanie ti má niečo naznačiť. Nie aby si, držal šialenú diétu a snažil sa za každú cenu schudnúť. Poďme ďalej.
Tento progress zapríčiniť, že sa v raných hodinách, keď už sme hore, VLDL zmení na menší LDL, ktorý nesie viac cholesterolu a ten sa zas vďaka LDL receptorom počas dňa vytratí, ak je vysoká citlivosť na inzulín. Potom prichádza HDL,… a Alipoprotein A. Články v sérii Hormóny #3 a #4 ti to vysvetlili do podrobna. Ak si nepamätáš, zopakuj si.
Alipoprotein A následne zostáva zvýšený počas dňa a jeho jedna forma najmä v noci, kedy zabraňuje krvi zrážať sa a udržuje jej vysoké magnetické pole.
Keď je však tvoj CR narušený, a tvoje mitochondrie nefungujú, tvoj CO2 klesne. Vieš si to aj merať (napr. Spiroergometria alebo Chem 7 – viď masterclass, kde sme si to ukazovali).
To znamená, že tvoje mitochondrie budú strácať oscilaciu, nebudú spaľovať tuk (= priberanie) a vieš ako na tento stres reagujú? Vlastne takto reaguje každá bunka v tele? No predsa zvýšia produkciu cholesterolu!
Premýšľaj nad tým…
Možno teda najväčšou chybou pri cholesterole nikdy nebolo to, či sme ho označili za dobrý alebo zlý. Najväčšou chybou bolo, že sme sa naň prestali pozerať ako fyzici a začali sme pri čísle v krvi namiesto pri VODÍKU.
Záver
Ak sa ti článok páčil a chceš ma podporiť v práci, zdieľaj článok ďalej. Tiež ma môžeš podporiť kúpou mojich kníh alebo akéhokoľvek produktu na mojom eshope.
P.S. Ak chceš byť informovaný vždy medzi prvými o zverejnení nového článku alebo podcastu, prihlás sa na odber nižšie.
Webináre a živé akcie
Ak ti dnešný článok pripomenul septembrový webinár OD BIG BANGU DO MATRIXU, nebola to náhoda. Práve tam som túto cestu skladal od vodíka, častíc a spinu až po mitochondriu. Aktuálne webináre aj živé akcie a workshopy nájdeš priebežne na webe.
Prémium členstvo 2026 – pridaj sa do komunity Mitochondriakov a stretávajme sa pravidelne
Otázok neustále pribúda a jediná možnosť pre mňa, ako na ne odpovedať, je Prémium členstvo. Práve tu máme v rámci komunity Mitochondriakov možnosť pýtať sa otvorene a na čokoľvek, stretávame sa pravidelne každý mesiac LIVE na ZOOM-e cez QaA webináre a pokračujeme aj na súkromnom fóre.
Pri kúpe jednorazového členstva s prístupom navždy získaš aj moje tlačené knihy Spoznaj Svoju Biológiu.

Ak ma chceš podporiť v práci a zároveň pokračovať v čítaní mimo obrazovky, môžeš siahnuť po balíku tlačených kníh Spoznaj Svoju Biológiu.
Prvá Mitochondriacka App ZDARMA
Aplikáciu predstavovať nemusím, hovorí sama za seba. Je ZDARMA a obsahuje moje niekoľkoročné vedomosti z článkov, Opaľovacieho protokolu, MasterClass Krvné testy a ďalších materiálov.
Mitochondriak® | Červené, NIR aj UV svetlo, cirkadiánne osvetlenie a uzemnená barefoot obuv
Tiež dávam do povedomia každému, koho zaujíma téma červeného, NIR aj UV svetla, cirkadiánneho osvetlenia, uzemnenia a mitochondrií, produkty Mitochondriak®. Mitochondriak je rovnako ako môj blog predovšetkým o mitochondriách a o edukácii ľudí o dôležitosti svetelnej výživy, nie iba o infrapaneloch.
Na eshope môžeš využiť zľavový kód na 10 % zľavu. V pokladni stačí zadať kód: jaroslavlachky.
Použité zdroje, referencie a štúdie
- Gold DA, Caron A, Fournier GP, Summons RE. Paleoproterozoic sterol biosynthesis and the rise of oxygen. Nature. 2017;543:420-423. DOI 10.1038/nature21412.
- A HIF independent oxygen-sensitive pathway for controlling cholesterol synthesis. Nature Communications. 2023. DOI 10.1038/s41467-023-40541-1.
- Orlikowska-Rzeznik H, Versluis J, Bakker HJ, Piatkowski L. Cholesterol Changes Interfacial Water Alignment in Model Cell Membranes. Journal of the American Chemical Society. 2024. PMID 38687869. DOI: 10.1021/jacs.4c00474.
- Cheng C-Y, Olijve LLC, Kausik R, Han S. Cholesterol enhances surface water diffusion of phospholipid bilayers. The Journal of Chemical Physics. 2014;141:22D513. PMID 25494784. DOI: 10.1063/1.4897539.
- Starke-Peterkovic T, Turner N, Vitha MF, Waller MP, Hibbs DE, Clarke RJ. Cholesterol effect on the dipole potential of lipid membranes. Biophysical Journal. 2006;90(11):4060-4070. PMID 16513788. DOI: 10.1529/biophysj.105.074666.
- Springer A, Hagen V, Cherepanov DA, Antonenko YN, Pohl P. Protons migrate along interfacial water without significant contributions from jumps between ionizable groups on the membrane surface. PNAS. 2011;108(35):14461-14466. PMID 21859952. DOI: 10.1073/pnas.1107476108.
- Daumke O, van der Laan M. Molecular machineries shaping the mitochondrial inner membrane. Nature Reviews Molecular Cell Biology. 2025. PMID 40369159. DOI: 10.1038/s41580-025-00854-z.
- Ikon N, Ryan RO. Cardiolipin and mitochondrial cristae organization. Biochimica et Biophysica Acta – Biomembranes. 2017. PMID 28336315. DOI: 10.1016/j.bbamem.2017.03.013.
- Domitin S, Puff N, Pilot-Storck F, Tiret L, Joubert F. Role of cardiolipin in proton transmembrane flux and localization. Biophysical Journal. 2025. PMID 39674891. DOI: 10.1016/j.bpj.2024.12.015.
- Rieger B, Arroum T, Borowski M-T, Villalta J, Busch KB. Mitochondrial F₁F₀ ATP synthase determines the local proton motive force at cristae rims. EMBO Reports. 2021. PMID 34595823. DOI: 10.15252/embr.202152727.
- Goicoechea L, Conde de la Rosa L, Torres S, García-Ruiz C, Fernández-Checa JC. Mitochondrial cholesterol: Metabolism and impact on redox biology and disease. Redox Biology. 2023;61:102643. PMID 36857930. DOI: 10.1016/j.redox.2023.102643.
- Miller WL, Bose HS. Early steps in steroidogenesis: intracellular cholesterol trafficking. Journal of Lipid Research. 2011;52(12):2111-2135. PMID 21976778. DOI: 10.1194/jlr.R016675.
- McCarty KD, Liu L, Tateishi Y, Wapshott-Stehli HL, Guengerich FP. The multistep oxidation of cholesterol to pregnenolone by human cytochrome P450 11A1 is highly processive. Journal of Biological Chemistry. 2024;300(1):105495. PMID 38006947. DOI: 10.1016/j.jbc.2023.105495.
- Jones PJ. Use of deuterated water for measurement of short-term cholesterol synthesis in humans. Canadian Journal of Physiology and Pharmacology. 1990. PMID 2200588. DOI: 10.1139/y90-145.
- Chikaraishi Y, Naraoka H, Poulson SR. Hydrogen and carbon isotopic fractionations of lipid biosynthesis among terrestrial (C3, C4 and CAM) and aquatic plants. Phytochemistry. 2004. PMID 15231410. DOI: 10.1016/j.phytochem.2004.03.036.
- Chikaraishi Y. Carbon and hydrogen isotopic composition of sterols in natural marine brown and red macroalgae and associated shellfish. Organic Geochemistry. 2006. DOI 10.1016/j.orggeochem.2005.12.006.
- Kose SH, Grice K, Orsi WD, Ballal M, Coolen MJL. Metagenomics of pigmented and cholesterol gallstones: the putative role of bacteria. Scientific Reports. 2018;8:11218. DOI 10.1038/s41598-018-29571-8.
- Seneff S, Nigh G, Kyriakopoulos AM. Is Deuterium Sequestering by Reactive Carbon Atoms an Important Mechanism to Reduce Deuterium Content in Biological Water? FASEB BioAdvances. 2025;7(6):e70019. PMC12147506. DOI: 10.1096/fba.2025-00032.
- Nuclear Magnetic Resonance Spectroscopy – Theory of NMR, nuclear spin values including 1H and 2H. Chemistry LibreTexts. Theory of Nuclear Magnetic Resonance.
- CODATA Recommended Values of the Fundamental Physical Constants: deuteron-proton magnetic moment ratio μd/μp = 0.30701220930. NIST. NIST CODATA.
- Brocklehurst B. Magnetic isotope effects in biology: a marker for radical pair reactions and electromagnetic field effects? International Journal of Radiation Biology. 1997. PMID 9374438. DOI: 10.1080/095530097143086.
- Zadeh-Haghighi H, Simon C. Magnetic isotope effects: a potential testing ground for quantum biology. Frontiers in Physiology. 2023;14:1338479. PMID 38148902. DOI: 10.3389/fphys.2023.1338479.
- Burd SC, Bagheri N, Condon AF et al. Magnetic resonance control of spin-correlated radical pair dynamics in vivo. Nature. 2026;651:940-945. DOI 10.1038/s41586-026-10282-4. PMID 41851455.
- Jones PJ, Schoeller DA. Evidence for diurnal periodicity in human cholesterol synthesis. Journal of Lipid Research. 1990;31(4):667-673. PMID 2351871. DOI: 10.1016/S0022-2275(20)42835-4.
- https://www.biorxiv.org/content/10.64898/2026.09.10.750628v1.full.pdf
- https://www.youtube.com/watch?v=HkyAt6gbgVc
Spomenuté články, série a prednášky
- Matrix #12 Jeden angström, ktorý rozhoduje o energii života.
- Matrix #13 Mitochondrie nevalidujú názory. Validujú signály.
- Séria Chiralita a asymetria, najmä diely #4, #14 a #21 spomenuté v texte.
- Séria Hormóny, najmä diely #3 až #7 o cholesterole, pregnenolóne, redoxe a steroidogenéze.
- Premium webináre 2026, vrátane septembrového webinára OD BIG BANGU DO MATRIXU.
Chcete z informácií načerpať ešte viac?
Pridajte sa medzi premium členov !

Ak máš nejakú otázku, alebo si našiel v článku gramatickú chybičku, napíš mi prosím dole do komentára :)
Ak chceš byť informovaný medzi prvými, vždy keď uverejním nový článok, vlož svoj email a ja ti pošlem upozornenie :)

Najpredávanejšie Protukty na Eshope, ktoré Vám môžu pomôcť prevziať svoj Život do vlastných Rúk!


 Matrix #13 Mitochondrie nevalidujú názory. Validujú signály, alias prečo tvoje telo nevie, že si keto, vegan ani biohacker
Tvoje mitochondrie nevedia, či si keto, vegan, biohacker alebo držíš fasting. Čítajú…
 Matrix #12 Jeden angström, ktorý rozhoduje o energii života, alias prečo mitochondria nie je batéria, ale tunelovací stroj
Mitochondria nie je batéria, ale angströmový tunelovací stroj. Od donor-akceptorovej vzdialenosti cez…
 Slnečné okuliare: ochrana oka, alebo filter biologického času?
Čo ak slnečné okuliare nie sú iba ochranou pred oslnením, ale optickým…